第 3 课 氮循环:系统的发动机
Part I · 认识系统 | 前置:第 1–2 课 | 对应原书:2.1、2.2、5.1–5.3 一句话:鱼菜共生的一切 —— 参数、设计、故障 —— 都可以还原成一条氮原子从"有毒"变成"有肥"再被搬走的路径。这条路径就是系统的发动机。
3.1 为什么氮是主线
氮(N)是所有生命的基础元素:
- 它是氨基酸的核心,氨基酸组成蛋白质,蛋白质是酶、细胞信号、组织结构的基础;
- 它是叶绿素的组成元素——没有氮,植物无法光合作用;
- 在植物体内,氮是含量仅次于碳、氧的元素(碳氧可从空气获得,氮不行)。
所以:谁控制了氮的形态,谁就控制了整个系统。
而氮的形态,是可以互相转换的。转换的方向决定了它是"毒"还是"肥":
| 形态 | 化学式 | 对鱼 | 对植物 | 关键 |
|---|---|---|---|---|
| 分子氮 | N₂ | — | 无法利用 | 大气中占 78%,但三键极稳定 |
| 氨 / 铵 | NH₃ / NH₄⁺ | 剧毒 | 可利用少量 | 鱼的主要排泄物 |
| 亚硝酸盐 | NO₂⁻ | 剧毒 | 可利用少量 | 中间产物,0.1 mg/L 即开始伤鱼 |
| 硝酸盐 | NO₃⁻ | 低毒 | 最爱吸收 | 系统的目标产物 |
| 有机氮 | 蛋白质等 | — | 不可直接利用 | 需要先被分解 |
「大气中氮气占约 78%,氧气约 21%」——这是原书给的数字,也是理解"为什么固氮很重要"的背景:最丰富的氮,植物偏偏吃不到。
3.2 自然界的氮循环(宏观背景)
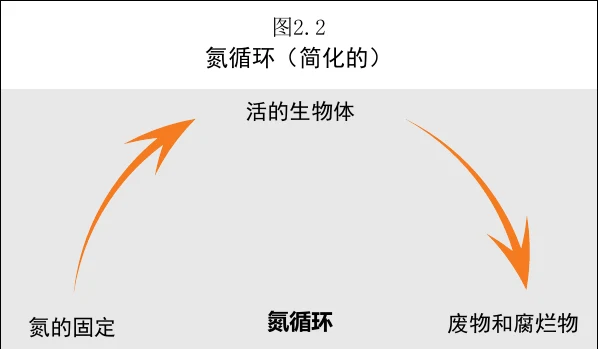
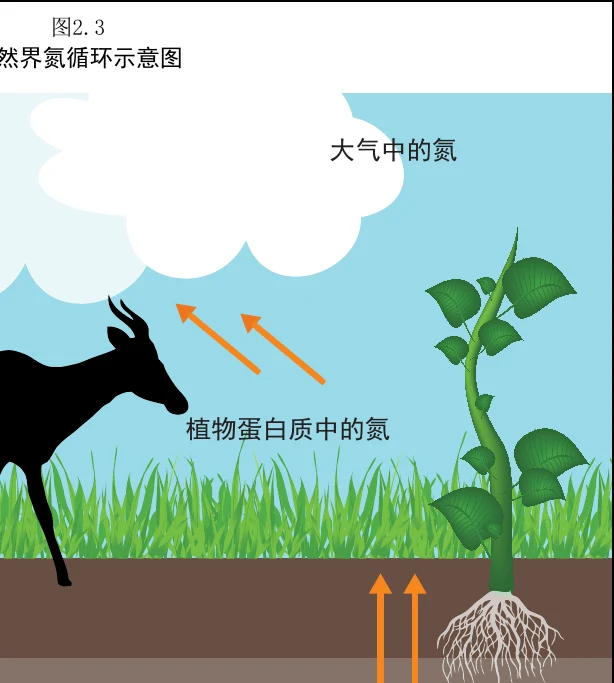
自然界的氮循环是一个环:
大气 N₂
  │  ← 固氮作用(固氮细菌 / 工业哈伯法)
  ▼
氨 NH₃
  │  ← 硝化作用(硝化细菌)
  ▼
亚硝酸盐 NO₂⁻ → 硝酸盐 NO₃⁻
                    │  ← 同化作用(植物吸收,变成植物蛋白)
                    ▼
              植物蛋白 / 动物蛋白
                    │  ← 分解(腐烂、排泄)
                    ▼
              氨(回到起点)
再加上一条逆向路径:反硝化细菌在缺氧条件下把硝酸盐还原成 N₂ 回到大气。
3.2.1 固氮:植物"吃不到"的氮怎么变能吃
大气中的 N₂ 是三键(N≡N),极其稳定,植物无法直接利用。必须先"固定"(把 N 和其他元素结合)。两条路径:
- 生物固氮:豆科植物根瘤中的固氮菌,把 N₂ 变成氨。这是自然界的主要来源。
- 工业固氮:哈伯-博施法,用高温高压把 N₂ 和 H₂ 合成氨,用于生产化肥。这是耗能过程——化肥的"隐性能耗"主要在这里。
这一点解释了鱼菜共生的一个深层价值:它绕开了工业固氮。氮的来源变成鱼饲料(饲料里的蛋白本身来自农业),系统内部完成形态转换,不需要额外合成氨。
3.2.2 氨化作用:有机氮 → 氨
死去的植物、动物、粪便中的有机氮,被真菌和异养细菌分解,释放出氨。这个过程叫氨化作用(矿化的一部分)。
在水产系统里,鱼的排泄物就是这一步的产物——鱼直接把氨排到水里,跳过了"腐烂"这一环,效率更高,也更危险(因为氨直接进了水体)。
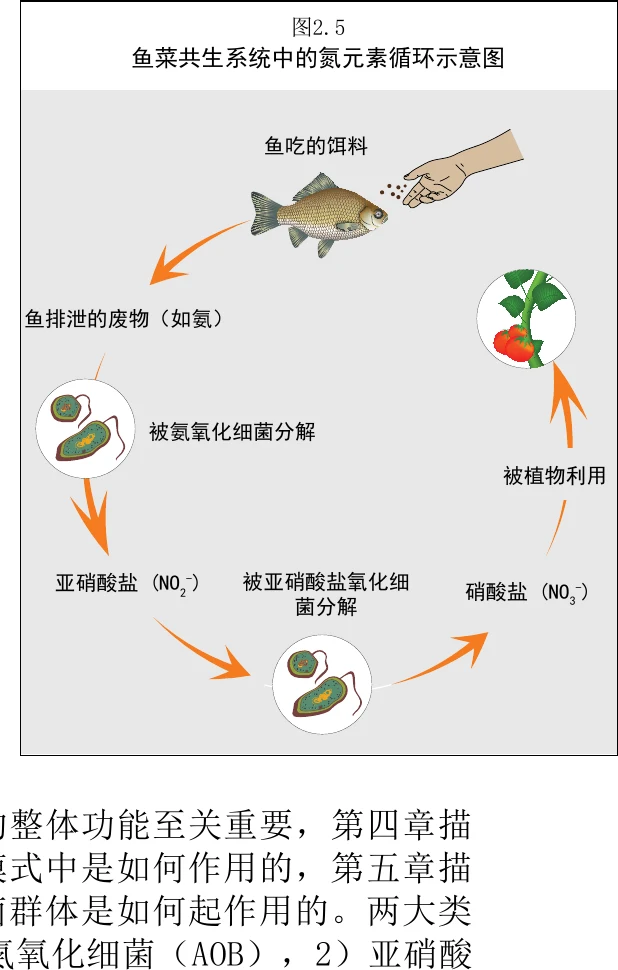
3.3 鱼菜共生里的氮循环:三个受限环节
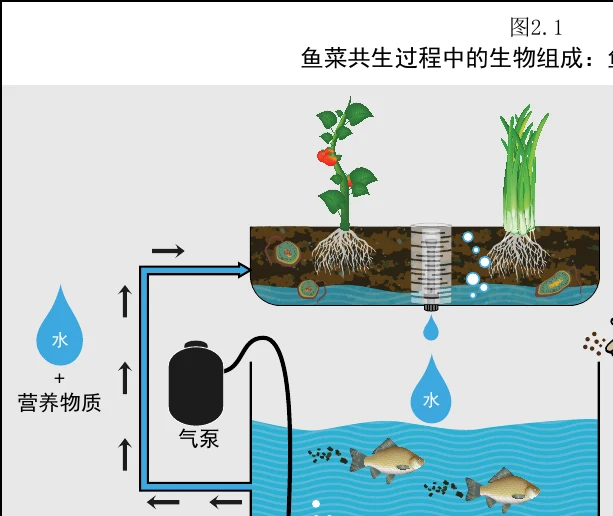
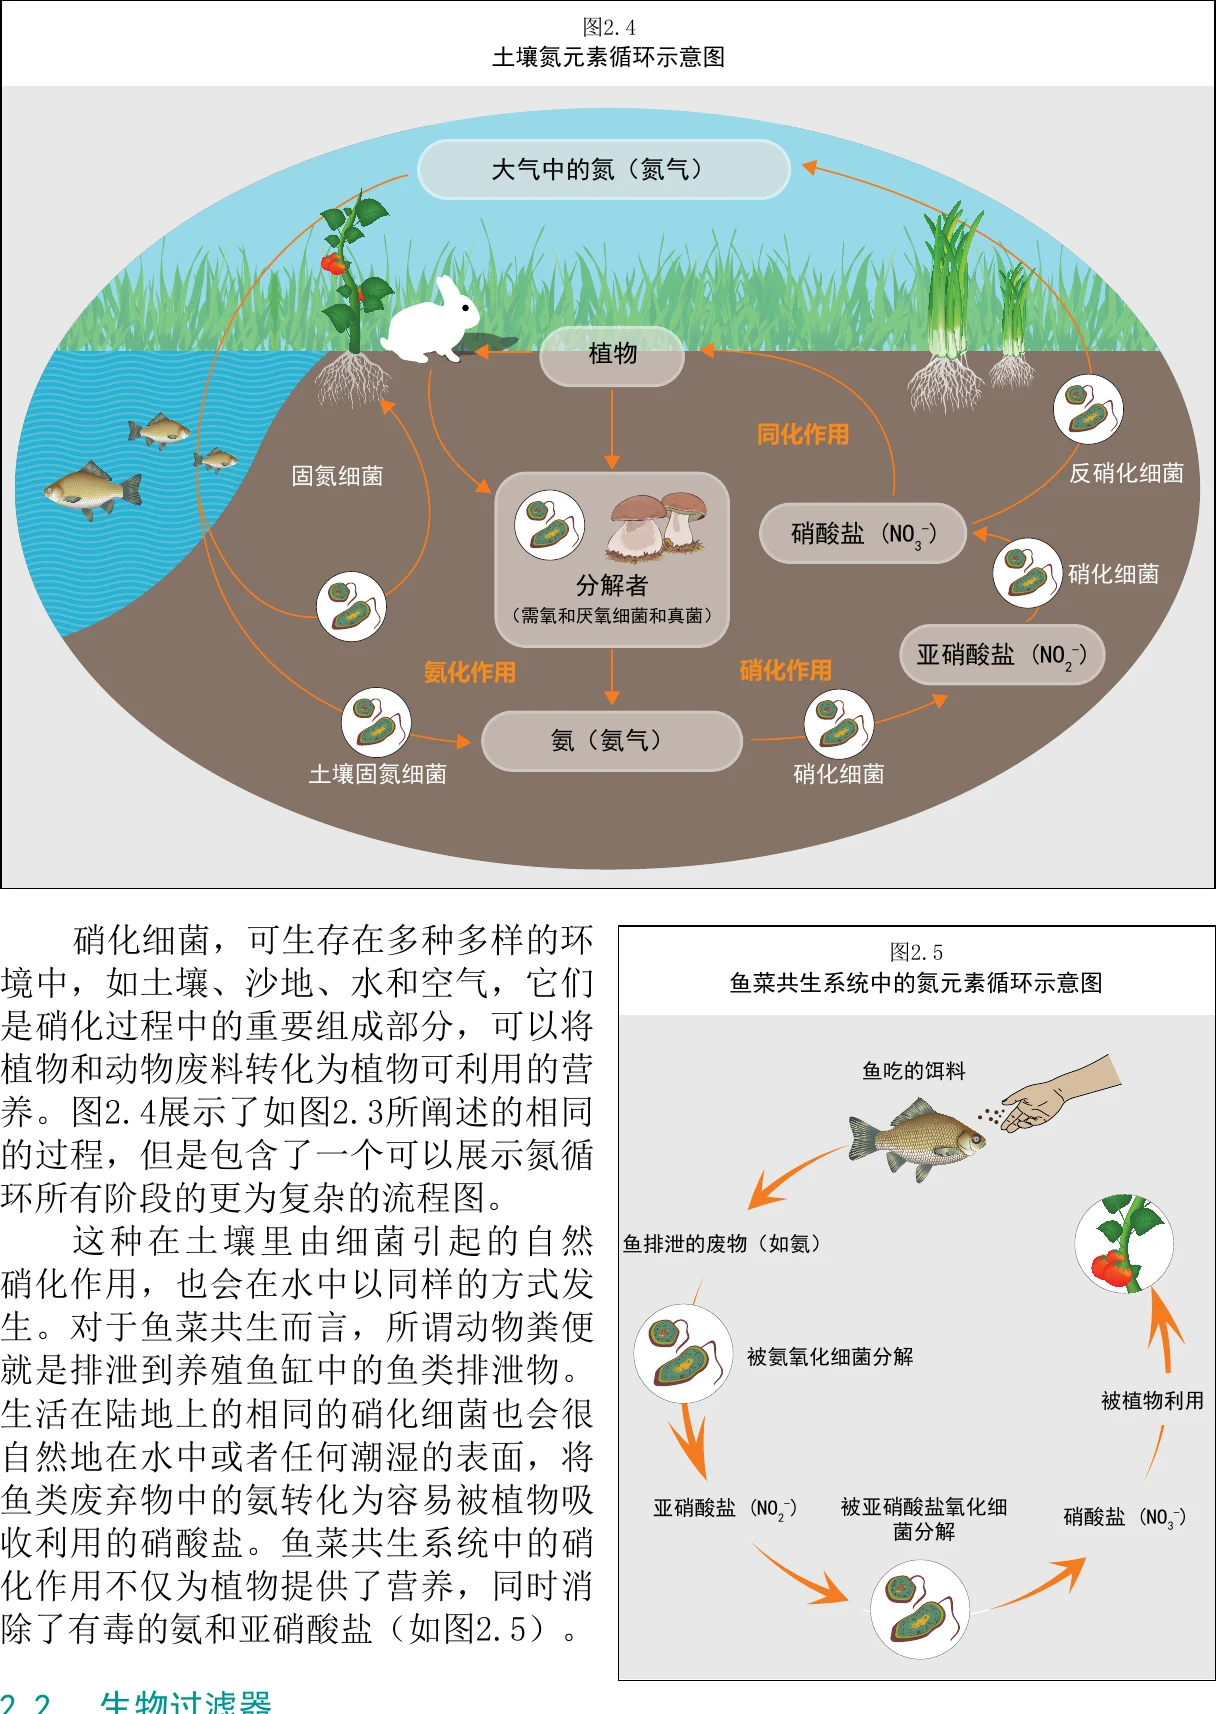
把宏观循环收窄到鱼菜共生系统,只保留有效环节:
        ┌──────────────┐
        │  鱼吃的饵料   │  ← 氮的"入口"(唯一入口)
        └──────┬───────┘
               │ 鱼代谢
               ▼
        ┌──────────────┐
        │ 氨(NH₃/NH₄⁺)│  ← 有毒!必须立刻处理
        └──────┬───────┘
               │ ① AOB 氨氧化细菌
               ▼
        ┌──────────────┐
        │ 亚硝酸盐 NO₂⁻ │  ← 更毒!
        └──────┬───────┘
               │ ② NOB 亚硝酸盐氧化细菌
               ▼
        ┌──────────────┐
        │ 硝酸盐 NO₃⁻   │  ← 植物最爱
        └──────┬───────┘
               │ ③ 植物吸收
               ▼
        ┌──────────────┐
        │  植物生物量   │  ← 氮的"出口"(主要出口)
        └──────────────┘
               │ 收获带走
               ▼
           离开系统
三个环节,每一步都有速率上限。整个系统能不能稳定,取决于三步速率是否匹配:
| 环节 | 反应 | 执行者 | 失效后果 |
|---|---|---|---|
| ① 氨氧化 | NH₃ → NO₂⁻ | AOB(Nitrosomonas 亚硝化单胞菌属) | 氨累积 → 鱼急性中毒 |
| ② 亚硝酸盐氧化 | NO₂⁻ → NO₃⁻ | NOB(Nitrobacter 硝化杆菌属) | 亚硝酸盐累积 → 鱼中毒 |
| ③ 同化 | NO₃⁻ → 植物组织 | 植物 | 硝酸盐累积 → 需换水 |
3.3.1 为什么中间产物比终点更毒
这是一个容易被忽略但极重要的设计洞察:
- 氨(起点)剧毒
- 亚硝酸盐(中间)更毒(对鱼而言 0.1 mg/L 即有害)
- 硝酸盐(终点)低毒(可耐受 400 mg/L 以上)
也就是说:硝化过程的前半段,毒性是上升的。 这就是为什么"培菌不完全"比"没有培菌"更危险——AOB 先长起来、NOB 还没长起来时,系统里会堆积大量亚硝酸盐,比直接排氨还致命。
这个现象在培菌期有个专门的名字:亚硝酸盐峰值(nitrite spike)。第 14 课会详细处理。
3.3.2 硝化反应的化学账
硝化是氧化反应——氧是反应物,不是旁观者。这决定了三件事:
NH₄⁺ + 1.5 O₂  →  NO₂⁻ + 2 H⁺ + H₂O        (AOB)
NO₂⁻ + 0.5 O₂  →  NO₃⁻                      (NOB)
────────────────────────────────────────────
NH₄⁺ + 2 O₂    →  NO₃⁻ + 2 H⁺ + H₂O        (总反应)
从这条式子能直接读出三个关键设计约束:
约束 1:硝化耗氧 → 必须曝气 每氧化 1 mol 氨需要 2 mol 氧气。这是"为什么溶氧必须 >5 mg/L"的化学根据,同时解释了"溶氧 <2 mg/L 硝化停止"。
约束 2:硝化产酸 → pH 必然下降 反应生成 2 个 H⁺。硝化天然是酸化过程。这是"为什么系统会自动变酸"的根本原因,也是"为什么需要碱度缓冲"的原因。
约束 3:硝化消耗碱度 → KH 会被耗尽 H⁺ 会与碳酸氢根(HCO₃⁻)反应,消耗碱度。碱度被耗尽后,H⁺ 无处可去,pH 会断崖式下跌。
独立信源复核(UF/IFAS):硝化是需氧过程,产生 CO₂ 与游离 H⁺,"若无足够缓冲会降低 pH";总碱度低于 20 mg/L 时常见硝化细菌无法有效工作;碱度耗尽是所谓"老缸综合征"(old tank syndrome)的成因。
3.4 生物过滤器:给细菌盖房子
硝化细菌需要在固体表面附着生长。系统里能提供的表面积包括:
- 植物根系表面
- 鱼缸内壁
- 管道内壁
- 基质颗粒表面(基质床)
- 专用生物过滤填料表面(生物球等)
问题在于:鱼密度一高,天然表面积就不够了。这时必须上独立的、高比表面积的生物过滤器。
3.4.1 比表面积(SSA)是核心指标
比表面积 = 单位体积材料能提供的表面积,单位 m²/m³。
| 材料 | 比表面积(m²/m³) | 每克日投喂所需体积(L) |
|---|---|---|
| 火山砾石 / 陶粒(基质床) | 约 300 | 1.0 L |
| 生物球 Bioballs®(NFT / DWC) | 约 600 | 0.5 L |
生物球比表面积是火山砾石的两倍,所以同样处理量只需一半体积。这个比率会在第 12 课做尺寸计算时直接用到。
这个数字只适用于粗糙、多孔的介质。光滑的塑料片、玻璃珠比表面积很低,不能用这个比率算。
3.4.2 矿化:固体废物也是养分
鱼粪里的养分,一部分直接溶在水里被植物吸收,但大部分仍以固体形式存在,植物无法摄取。
这些固体被异养细菌分解,养分才释放到水中。这个过程叫矿化作用(mineralization)。
矿化与硝化是两件事,需要分开考虑:
| 硝化 | 矿化 | |
|---|---|---|
| 底物 | 溶解态氨/亚硝酸盐 | 固体有机物 |
| 执行者 | 自养硝化菌(AOB/NOB) | 异养细菌 |
| 产物 | 硝酸盐 | 溶解态养分(含氨) |
| 位置 | 生物膜表面 | 固体停留处 |
关键权衡:固体在系统里停留越久,矿化越充分、养分释放越多;但如果固体得不到妥善分解,就会:
- 阻碍水流
- 消耗氧气,制造缺氧环境
- 产生硫化氢(H₂S,有臭鸡蛋味,剧毒)
- 引发反硝化(硝酸盐变回 N₂,白白损失氮)
所以:
- 基质床可以容忍一定量的固体留在床内(基质本身是矿化床);
- NFT / DWC 完全不能容忍(会堵管、缺氧),必须靠机械分离器把固体拿出去。
如果要矿化这些被分离的固体,正确做法是:在独立容器里用气石充氧、靠异养菌单独分解,处理后的水再倒回系统,剩余残渣送去做土壤肥料。
原书提到:一些大型系统会故意在过滤器里保留固体,在保证水流和溶氧的前提下榨取最大养分释放。但这对小规模 NFT/DWC 不可行。
3.4.3 硝化菌的"宜居条件"
硝化细菌不是"有氨就能活",它对环境有明确要求。五条缺一不可:
| 条件 | 要求 | 低于要求会怎样 |
|---|---|---|
| 表面积 | 越大越好(SSA 高) | 菌群总量不足,处理能力封顶 |
| pH | AOB 最佳 7.2–7.8;NOB 最佳 7.2–8.2;在鱼菜共生中 6–8.5 可耐受 | <6 时硝化能力显著下降 |
| 水温 | 理想 17–34 ℃ | <17 ℃ 产能下降;<10 ℃ 降至 50% 以下 |
| 溶解氧 | 最佳 4–8 mg/L | <2 mg/L 硝化水平下降;缺氧时转为反硝化 |
| 紫外线 | 必须遮蔽 | UV 杀灭菌群,尤其建群初期(定殖需 3–5 天) |
关于 UV 这条,很多人会忽略:新建系统时,如果鱼缸和过滤器直接暴露在阳光下,UV 会延缓甚至阻断生物膜形成。简单解法是用不透 UV 的材料遮盖鱼缸和过滤器,至少维持到菌群完全建立。这也解释了为什么"系统变绿"(藻类爆发)总伴随着"硝化变差"——两者是同一个光照问题的两面。
3.4.4 硝化细菌的水质耐受范围(原书表 2.1)
| 指标 | 耐受范围 |
|---|---|
| 温度 | 17–34 ℃ |
| pH | 6–8.5 |
| 氨 | < 3 mg/L |
| 亚硝酸盐 | < 3 mg/L |
| 硝酸盐 | < 400 mg/L |
| 溶解氧 | 4–8 mg/L |
⚠️ 注意这张表是细菌的耐受范围,不是"目标值"。目标值更严(见第 5 课)。耐受范围的意思是"超出这个范围细菌会死",目标值的意思是"在这个范围里细菌效率最高"。
3.5 有害细菌:另外三类
生物过滤器里不只有硝化菌。还有三类需要知道:
3.5.1 硫酸盐还原菌
在厌氧条件下把硫酸盐还原成硫化氢(H₂S)。H₂S 有臭鸡蛋味,对鱼剧毒,并且会腐蚀设备。
成因:固体废物长期堆积形成缺氧死区。
这是"基质床不能太久不清理"和"固体必须及时移除"的化学理由。
3.5.2 反硝化细菌
在缺氧条件下把硝酸盐还原成 N₂ 逸出。对系统而言这是氮的损失——本该给植物的养分跑掉了。
有趣的是,反硝化在废水处理里是好事(脱氮),在鱼菜共生里却是不希望发生的。同一个反应,目标不同,评价就相反。有些设计会专门做"反硝化区"来控硝酸盐过高,但对小系统来说通常没必要。
3.5.3 病原菌
鱼菜共生系统若引入人畜粪便、病死鱼、污染水源,可能带来沙门氏菌、大肠杆菌等。
对策见第 19 课(食品安全部分),核心三条:不让恒温动物的粪便进系统、不让系统水打湿可食叶片、收获后清洗。
3.6 一张图理解"什么是好的氮循环"
好                         坏
──────────────────────────────────────────
氨 ≈ 0                    氨 > 1 mg/L
亚硝酸盐 ≈ 0              亚硝酸盐 > 1 mg/L
硝酸盐 5–150 mg/L         硝酸盐 <5(植物饿)或 >150(需换水)
固体及时移除或矿化         固体堆积、发黑、有臭味
溶氧 > 5 mg/L             溶氧 < 2 mg/L
pH 6–7 且稳定             pH 持续下滑或剧烈波动
无藻类                    水体发绿(UV 破坏菌膜)
这张表是后面第 19 课故障排查的"根表"——所有故障最终都会落到其中一行。
3.7 本课要点
- 氮是主线。鱼菜共生 = 一条氮从"毒"到"肥"再到"被搬走"的路径。
- 三步:AOB 氨→亚硝酸盐 → NOB 亚硝酸盐→硝酸盐 → 植物吸收硝酸盐。
- 毒性顺序:硝酸盐 < 氨 < 亚硝酸盐。中间产物最毒 → 培菌不完全比不培菌更危险。
- 硝化化学账给出三条设计约束:耗氧 → 要曝气;产酸 → pH 会降;耗碱度 → KH 会耗尽。
- 生物过滤能力由比表面积决定:火山砾石 ≈300 m²/m³,生物球 ≈600 m²/m³。
- 矿化(固体 → 溶解养分)与硝化是两回事;固体停留有利于矿化,但堆积会产 H₂S、引发反硝化。
- 硝化菌五条件:表面积、pH、水温、溶氧、避 UV。
- 三类"帮倒忙"的菌:硫酸盐还原菌(产 H₂S)、反硝化菌(损失氮)、病原菌(食品安全)。
3.8 自查清单
- 不看资料写出硝化的两步反应式和总反应式。
- 从总反应式推导出三条设计约束。
- 为什么"培菌到一半"的系统比"完全没培菌"的系统更容易死鱼?
- 比表面积 300 vs 600 m²/m³,对应每克日投喂需要多少升?为什么差两倍?
- 矿化和硝化的底物、执行者、产物分别是什么?
- 固体废物在系统里"留得越久越好"这句话对一半错一半,错在哪?
- 为什么遮光不仅是为了防藻,也是为了保护硝化菌?
下一课 → 04-三类生物与生态平衡.md
原书插图
以下 6 幅图取自 FAO 589 原书,图注为原书官方说明,与本章内容对应。